Associação entre espécies e similaridade entre áreas
Fitossociologia
Ecologia
Tabelas 2 × 2, teste qui-quadrado e exato de Fisher para associação entre espécies; índices de Jaccard, Sørensen e Bray-Curtis e dendrograma de similaridade, com os dados abertos caixeta.
Duas perguntas diferentes, com ferramentas parecidas:
Associação: duas espécies tendem a ocorrer nas mesmas parcelas (associação positiva), em parcelas diferentes (negativa) ou de forma independente?
Similaridade: duas áreas (parcelas ou caixetais) têm composição de espécies parecida?
Em ambos os casos, partimos de uma tabela espécie × parcela, montada com os dados caixeta (3 caixetais × 5 parcelas de 10 × 20 m).
Roteiro da aula prática (16/10 · EE5)
Montar a tabela 2 × 2 de um par de espécies e testar a associação à mão (seção 2);
Testar todos os pares de espécies com pelo menos 5 árvores (seção 3);
Calcular a similaridade entre os caixetais e entre as parcelas (seções 4 e 5);
Interpretar o dendrograma e responder aos exercícios (seção 6).
1. Dados
cx <-read.csv("../dados/caixeta.csv") # no seu projeto: read.csv("dados/caixeta.csv")cx$especie[cx$especie =="Callophyllum brasiliensis"] <-"Calophyllum brasiliensis"arv <-unique(cx[, c("local", "parcela", "arvore", "especie")]) # uma linha por árvorearv$parc <-paste(arv$local, arv$parcela, sep ="_")ab <-unclass(table(arv$especie, arv$parc)) # abundância: espécie × parcelapa <- (ab >0) *1# presença (1) e ausência (0)dim(pa)
[1] 42 15
2. Associação entre duas espécies
Para um par de espécies A e B, contamos as parcelas em cada situação:
B presente
B ausente
A presente
\(a\)
\(b\)
A ausente
\(c\)
\(d\)
com \(N = a + b + c + d\) parcelas. Se as espécies forem independentes, o valor esperado de \(a\) é \(E(a) = (a+b)(a+c)/N\). Se \(a > E(a)\), a associação é positiva; se \(a < E(a)\), negativa.
O teste qui-quadrado com correção de Yates (1 grau de liberdade) é:
Vamos testar Calophyllum brasiliensis e Psidium sp:
A <- pa["Calophyllum brasiliensis", ]B <- pa["Psidium sp", ]a <-sum(A ==1& B ==1); b <-sum(A ==1& B ==0)c <-sum(A ==0& B ==1); d <-sum(A ==0& B ==0)N <- a + b + c + dc(a = a, b = b, c = c, d = d, N = N)
 a  b  c  d  N
 2  5  3  5 15
Ea <- (a + b) * (a + c) / Nqui <- N * (abs(a * d - b * c) - N /2)^2/ ((a + b) * (c + d) * (a + c) * (b + d))c(a_observado = a, a_esperado =round(Ea, 2), qui2 =round(qui, 3),qui2_critico =round(qchisq(0.95, 1), 3))
O \(\chi^2\) calculado é menor que o crítico (3,841): não há associação significativa.
Quando as frequências esperadas são pequenas
Com só 15 parcelas, várias caselas da tabela 2 × 2 têm frequência esperada menor que 5, e o \(\chi^2\) deixa de ser confiável. Nesse caso, usamos o teste exato de Fisher:
chisq.test(tab22)$p.value # mesma conta da fórmula acima (com Yates)
[1] 1
fisher.test(tab22)$p.value
[1] 1
Coeficientes de associação
Além do teste, medimos a intensidade da associação. Os mais usados são:
Jaccard:\(J = a / (a + b + c)\), de 0 (nunca juntas) a 1 (sempre juntas);
Ochiai:\(O = a / \sqrt{(a+b)(a+c)}\);
c(Jaccard = a / (a + b + c), Ochiai = a /sqrt((a + b) * (a + c)))
  Jaccard    Ochiai
0.2000000 0.3380617
3. Todos os pares de espécies
Testamos os pares entre as espécies com pelo menos 5 árvores, com o teste de Fisher:
sp <-names(which(rowSums(ab) >=5))par_sp <-t(combn(sp, 2))assoc <-data.frame(A = par_sp[, 1], B = par_sp[, 2])assoc[, c("a", "b", "c", "d", "Jaccard", "sinal", "p_Fisher")] <-NAfor (k inseq_len(nrow(assoc))) { x <- pa[assoc$A[k], ]; y <- pa[assoc$B[k], ] a <-sum(x & y); b <-sum(x &!y); c <-sum(!x & y); d <-sum(!x &!y) Ea <- (a + b) * (a + c) / (a + b + c + d) assoc[k, c("a", "b", "c", "d")] <-c(a, b, c, d) assoc$Jaccard[k] <-round(a / (a + b + c), 2) assoc$sinal[k] <-ifelse(a > Ea, "+", ifelse(a < Ea, "−", "0")) assoc$p_Fisher[k] <-round(fisher.test(matrix(c(a, c, b, d), 2))$p.value, 4)}knitr::kable(assoc[assoc$p_Fisher <0.05, ], row.names =FALSE,caption ="Pares de espécies com associação significativa (Fisher, p < 0,05).")
Pares de espécies com associação significativa (Fisher, p < 0,05).
A
B
a
b
c
d
Jaccard
sinal
p_Fisher
Alchornea triplinervia
Myrcia sulfiflora
0
6
5
4
0.0
−
0.0440
Calophyllum brasiliensis
Mela 1
0
7
5
3
0.0
−
0.0256
jussara
Psidium sp
3
0
2
10
0.6
+
0.0220
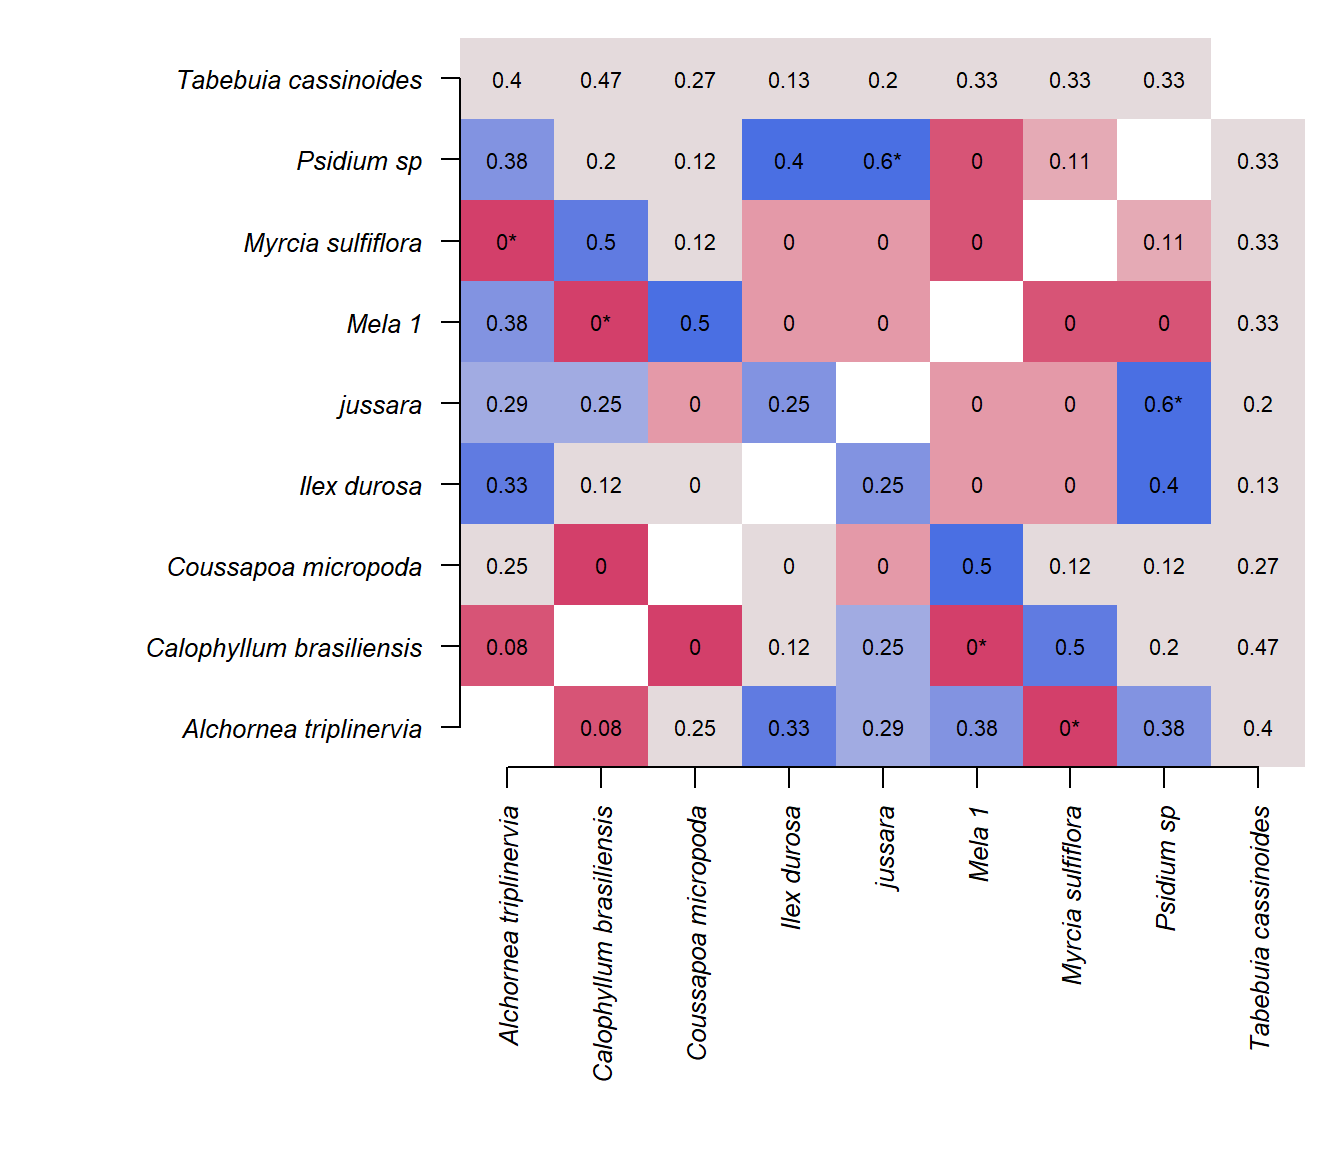
M <-matrix(NA, length(sp), length(sp), dimnames =list(sp, sp))for (k inseq_len(nrow(assoc))) { v <-ifelse(assoc$sinal[k] =="+", 1, -1) * (1- assoc$p_Fisher[k]) M[assoc$A[k], assoc$B[k]] <- M[assoc$B[k], assoc$A[k]] <- v}par(mar =c(10, 12, 1, 1))image(1:length(sp), 1:length(sp), M, col =hcl.colors(20, "Blue-Red 2", rev =TRUE),zlim =c(-1, 1), axes =FALSE, xlab ="", ylab ="")axis(1, 1:length(sp), sp, las =2, font =3, cex.axis =0.8)axis(2, 1:length(sp), sp, las =1, font =3, cex.axis =0.8)for (k inseq_len(nrow(assoc))) { i <-match(assoc$A[k], sp); j <-match(assoc$B[k], sp) rot <-paste0(assoc$Jaccard[k], ifelse(assoc$p_Fisher[k] <0.05, "*", ""))text(i, j, rot, cex =0.7); text(j, i, rot, cex =0.7)}
Matriz de associação entre as espécies com pelo menos 5 árvores. Azul: positiva; vermelho: negativa; * = significativa (p < 0,05). O número é o índice de Jaccard.
Associação ou ambiente?Psidium sp e jussara aparecem positivamente associadas, mas quase todas as suas ocorrências estão em jureia. Já Calophyllum brasiliensis e Mela 1 aparecem negativamente associadas porque Mela 1 só ocorre em retiro, onde não há Calophyllum. Isso pode refletir a diferença entre os locais (ambiente, história, distância), e não uma interação entre as espécies. É o mesmo efeito de escala que vimos nos índices de agregação.
4. Similaridade entre os caixetais
Para comparar áreas, trocamos os papéis: \(a\) = espécies presentes nas duas áreas, \(b\) = só na primeira, \(c\) = só na segunda.
ab_local <-unclass(table(arv$local, arv$especie)) # local × espéciepa_local <- (ab_local >0) *1similaridade <-function(x, y) { a <-sum(x >0& y >0); b <-sum(x >0& y ==0); c <-sum(x ==0& y >0)c(Jaccard = a / (a + b + c),Sorensen =2* a / (2* a + b + c),BrayCurtis =2*sum(pmin(x, y)) /sum(x + y),comuns = a)}pares <-combn(rownames(ab_local), 2)sim_local <-t(apply(pares, 2, function(p) similaridade(ab_local[p[1], ], ab_local[p[2], ])))rownames(sim_local) <-apply(pares, 2, paste, collapse =" × ")knitr::kable(round(sim_local, 2), caption ="Similaridade entre os caixetais.")
Similaridade entre os caixetais.
Jaccard
Sorensen
BrayCurtis
comuns
chauas × jureia
0.09
0.17
0.39
3
chauas × retiro
0.08
0.15
0.54
2
jureia × retiro
0.06
0.11
0.47
2
A similaridade florística (Jaccard, Sørensen) é muito baixa: os caixetais compartilham poucos nomes de espécies. Já o Bray-Curtis é bem mais alto, porque a caixeta, presente nos três, domina a abundância.
Cuidado com os nomes! Morfoespécies como myrtaceae1, Mela 1 ou indet.1 receberam rótulos em cada local e podem ser a mesma espécie em locais diferentes. Como só nomes idênticos contam como “comuns”, a similaridade florística pode estar subestimada. Este é um bom exemplo de por que padronizar os nomes antes da análise.
5. Similaridade entre parcelas e dendrograma
Com 15 parcelas, uma tabela de similaridade fica difícil de ler. O dendrograma (agrupamento por UPGMA, a média das distâncias) resume a matriz. Usamos a distância = 1 − similaridade:
dist_matriz <-function(m, indice) { n <-nrow(m); D <-matrix(0, n, n, dimnames =list(rownames(m), rownames(m)))for (i in1:n) for (j in1:n) D[i, j] <-1-similaridade(m[i, ], m[j, ])[indice]as.dist(D)}ab_parc <-t(ab) # parcela × espécied_jac <-dist_matriz(ab_parc, "Jaccard")d_bc <-dist_matriz(ab_parc, "BrayCurtis")
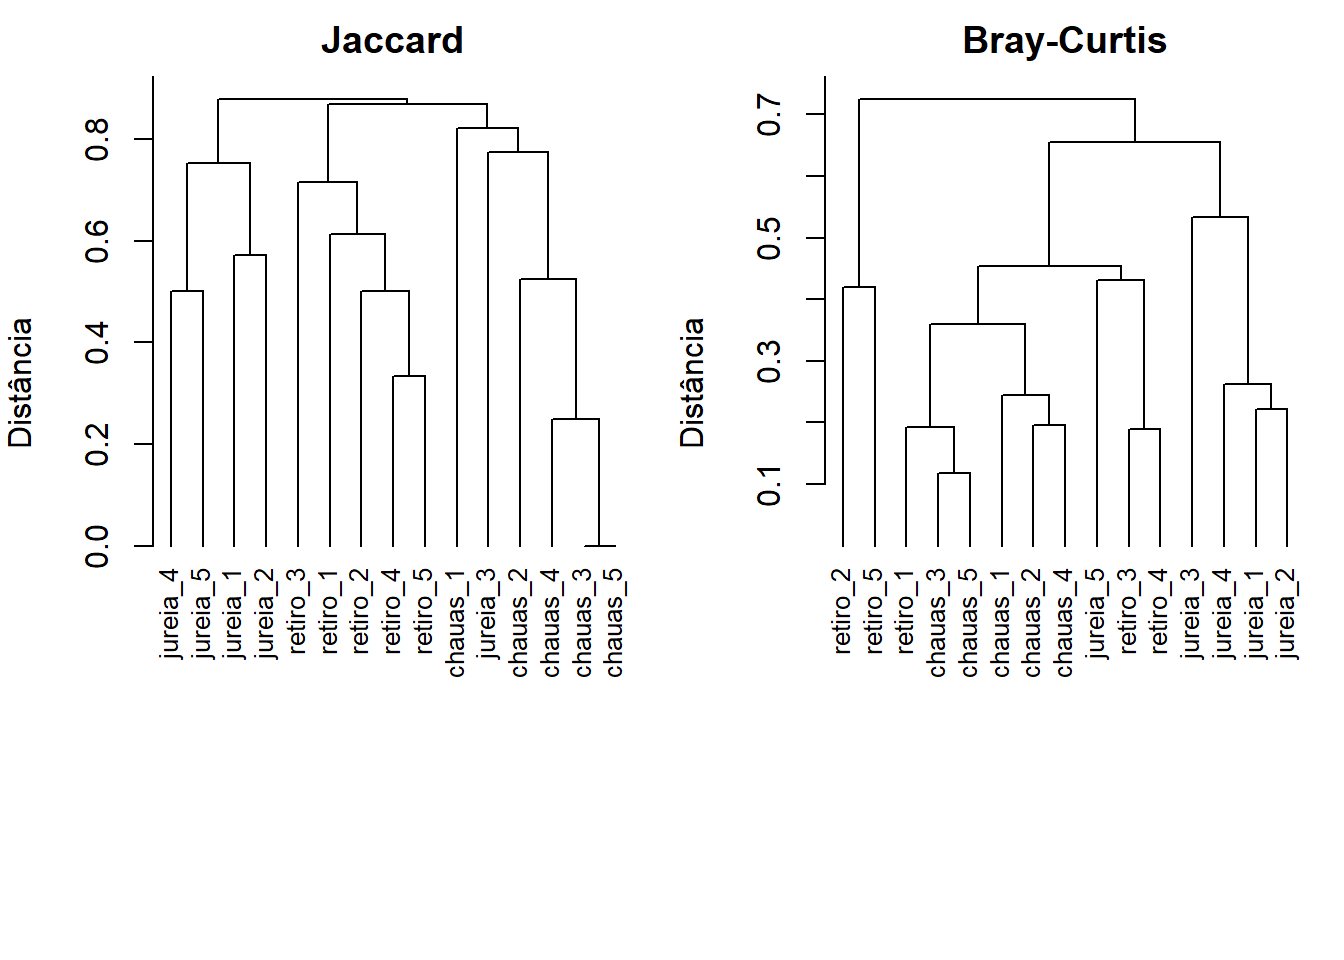
par(mfrow =c(1, 2), mar =c(7, 4, 2, 1))distancias <-list(Jaccard = d_jac, `Bray-Curtis`= d_bc)for (nm innames(distancias)) { h <-hclust(distancias[[nm]], method ="average")plot(h, hang =-1, main = nm, xlab ="", sub ="", ylab ="Distância", cex =0.8)}
Dendrogramas (UPGMA) das 15 parcelas pela distância de Jaccard (presença/ausência) e de Bray-Curtis (abundância).
Para conferir se o dendrograma representa bem a matriz original, calculamos a correlação cofenética (valores acima de 0,7 indicam boa representação):
O pacote vegan calcula as mesmas distâncias: vegan::vegdist(ab_parc, "jaccard", binary = TRUE) e vegan::vegdist(ab_parc, "bray"). O resultado deve ser igual ao da nossa função.
6. Exercícios
Para entregar (EE5)
Monte à mão a tabela 2 × 2 de Myrcia sulfiflora × Tabebuia cassinoides. Por que não é possível testar a associação entre elas?
Quais pares de espécies têm associação significativa? Ela é positiva ou negativa? Proponha uma explicação para cada caso.
Por que o teste de Fisher é mais adequado que o \(\chi^2\) para estes dados?
Compare Jaccard, Sørensen e Bray-Curtis entre os caixetais. Por que o Bray-Curtis é tão maior?
No dendrograma, as parcelas se agrupam por caixetal? O que isso indica sobre a composição de espécies dos três locais?
Escolha duas morfoespécies que possam ser a mesma espécie em locais diferentes. Junte-as (renomeie no R) e recalcule a similaridade. O que muda?
Para o relatório (formato de artigo)
Esta prática gera a Tabela 3 (similaridade entre os caixetais) e a Figura 3 (dendrogramas das parcelas).
Referências
FELFILI, J. M. et al. Fitossociologia no Brasil: métodos e estudos de caso. Viçosa: Editora UFV, 2011.